
 Un haplogrupo no mide tu porcentaje de sangre esteparia, y pongamos por ejemplo el R1b. Se puede ser portador del haplogrupo R1b y no tener absolutamente nada de componente genético estepario. La ascendencia "Steppe EMBA East" (o ancestría de la Estepa de la Edad del Bronce Temprano y Medio-Oriental) hace referencia a una “mezcla” en el perfil genético arqueogenético específico de las poblaciones de pastores nómadas que habitaron las estepas euroasiáticas. Se asocia principalmente con la famosa cultura de Yamnaya.
Por Estepa se refiere a la inmensa llanura que se extiende desde Ucrania y Rusia (estepa póntica-caspiana) hasta Mongolia. EMBA (Early-Middle Bronze Age) corresponde a la Edad del Bronce Temprano y Medio (aproximadamente entre el 3000 a. C. y el 1800 a.C.).
El componente de las estepas no se detecta mirando un solo gen o haplogrupo, sino analizando cientos de miles de marcadores (SNPs o Polimorfismos de Nucleótido Único) a lo largo de todo tu genoma (ADN AUTOSÓMICO) y se cuantifica mediante herramientas de genética de poblaciones y paleogenética basadas en modelos estadísticos avanzados [Nature, Raghavan et al., 2014]. Este componente de las estepas no pertenece exclusivamente a un solo haplogrupo, aunque sí estuvo fuertemente dominado por una familia de linajes específicos.
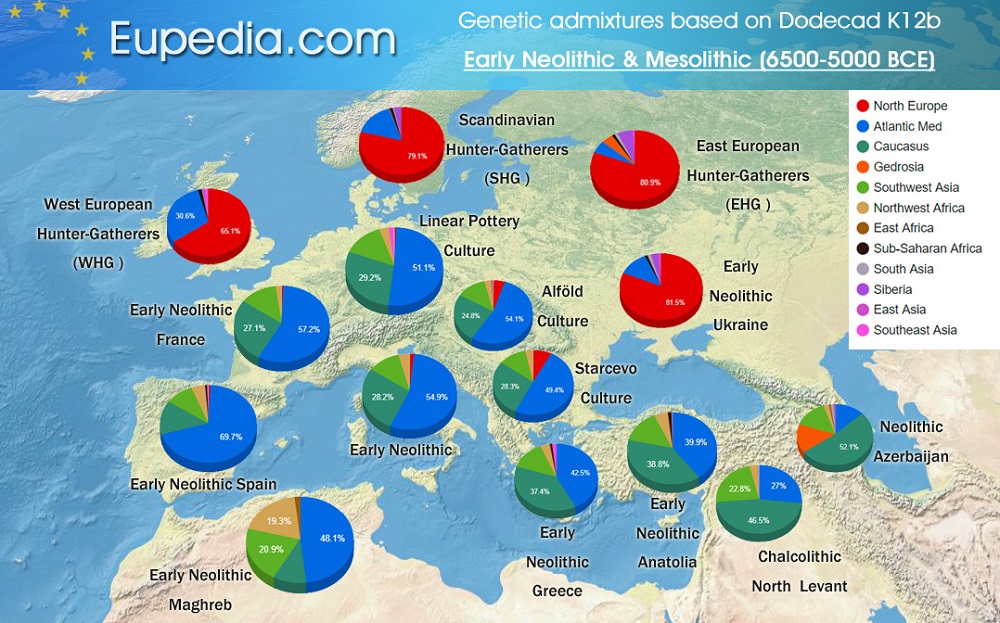
Anteriormente se pensaba que los pastores de las estepas (Yamnaya) eran una mezcla casi pura de Cazadores-Recolectores de Europa del Este (EHG) y Cazadores-Recolectores del Cáucaso (CHG). Las nuevas herramientas matemáticas de Lazaridis y Reich (2025) han añadido un tercer aporte genético a esa mezcla, y que algunos ya suponíamos. Reich ha demostrado que los Yamnaya contienen pequeñas trazas diluidas pero medibles del genoma occidental de Villabruna (primer R1b).
Reich (2025) demuestra que, mucho antes de las invasiones de la Edad del Bronce hacia Europa Occidental, ya existía un flujo génico inverso. Los genes de Cazadores-Recolectores de Europa Occidental (tipo Villabruna) se habían desplazado hacia el este a través de las redes de cazadores del río Dniéper y el Don, integrándose sutilmente en el núcleo estepario primario.
La desconexión entre Haplogrupo y Componente Autosómico.
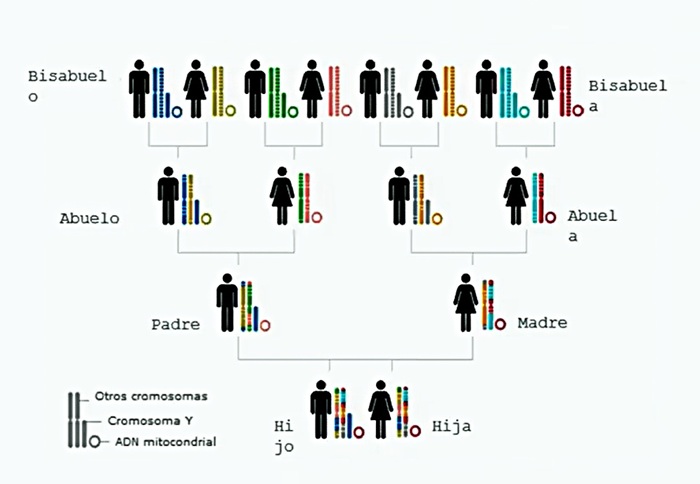
Los haplogrupos muestran dos líneas directas en tu árbol genealógico (el padre de tu padre de tu padre... y la madre de tu madre de tu madre...). Si tienes 4 abuelos, 8 bisabuelos y 16 tatarabuelos, los haplogrupos ignoran a la inmensa mayoría de ellos. En cambio, el ADN autosómico contiene fragmentos de todos y cada uno de tus antepasados recientes, es el único que puede decirte con precisión si tienes un % de componente de las estepas, un % de agricultor neolítico y un % de cazador-recolector.
Un haplogrupo no mide tu porcentaje de sangre esteparia, y pongamos por ejemplo el R1b. Se puede ser portador del haplogrupo R1b y no tener absolutamente nada de componente genético estepario. El ejemplo de los vascos actuales, que tienen uno de los porcentajes más altos de Europa del haplogrupo paterno R1b (supera el 80%) y sin embargo, su componente de las estepas general (autosómico) es MUY moderado, porque durante siglos sus antepasados se mezclaron "casi" exclusivamente con gentes que tenían ADN de agricultores neolíticos y cazadores-recolectores locales.
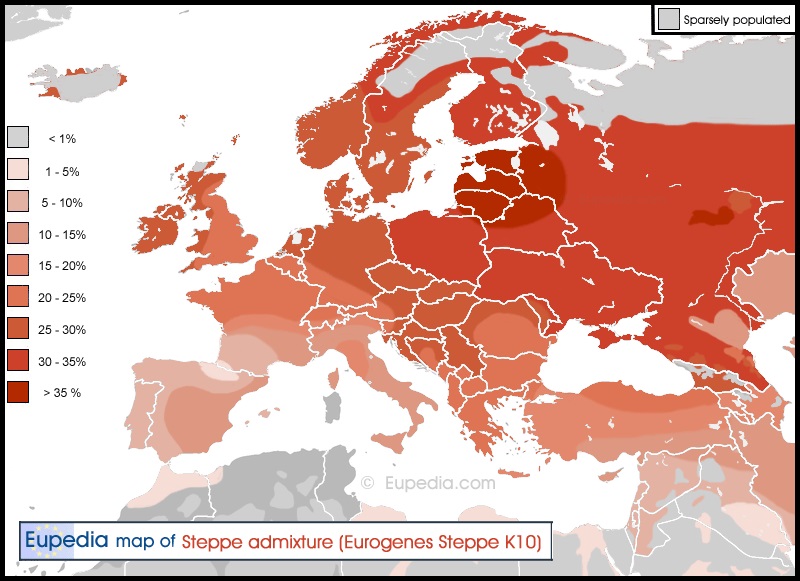 Otros ejemplos de R1b antiguos SIN ASCENDENCIA ESTEPARIA son el Hombre de Villabruna que vivió unos 9.000 años antes de que los pastores Yamnaya salieran de Rusia y Ucrania. Su ADN general (autosómico) era 100% de Cazador-Recolector Occidental (WHG).
Otro es el individuo ATP03 del Portalón en Atapuerca, de 5.466 años antes del presente (anterior a las migraciones esteparias) ha sido reclasificado por Reich en julio de 2022 como linaje R1b-P297 (linaje padre del M269) y NO portan NI UNA SOLA TRAZA del genoma de las estepas.
El individuo Troc3 (Els Trocs, Huesca), un hombre que vivió hace unos 7.300 años (aprox. 5300 a.C.) en pleno Neolítico Antiguo, su análisis determinó que pertenecía al haplogrupo R1b1a basal. Su ADN Autosómico era 100% Agricultor Neolítico (EEF), idéntico al de las poblaciones que venían de Anatolia (actual Turquía) y NO compartía ni una sola letra con los pastores de las estepas.
En los yacimientos prehistóricos de los Países Bálticos, concretamente en Zvejnieki (Letonia), los restos de varios cazadores-recolectores que vivieron hace entre 7.500 y 9.000 años (en torno al 7000–5500 a.C) dieron positivo en formas basales de R1b1a-P297. Su genoma era 100% Cazador-Recolector del Este (EHG). Tenían una piel clara y ojos predominantemente azules, pero CERO COMPONENTE ESTEPARIO, ya que ese componente ocurrió miles de años después.
En una cueva Alemana (Blätterhöhle) se hallaron restos de cazadores-recolectores de hace unos 9.000 años pertenecientes a R1b-V88. Su ADN autosómico era puramente Cazador-Recolector Occidental (WHG).
En la Cerdeña Prehistórica, en sus yacimientos del Neolítico sardo se han descubierto numerosos esqueletos pertenecientes a la mutación R1b-V88. Su ADN autosómico era puramente agricultor local, con 0% de ADN de las estepas. La isla de Cerdeña funcionó como una auténtica cápsula del tiempo genética en Europa. Durante el Bronce Final (1300–800 a.C.), las poblaciones de la espléndida cultura nurágica mantuvieron una continuidad casi absoluta con los agricultores del Neolítico europeo (EEF), registrando un 0% de componente estepario. Este linaje R1b local no descendía de los nómadas esteparios, sino de cazadores mesolíticos europeos que se habían integrado miles de años antes con los agricultores del Mediterráneo.
Incluso durante el periodo de transición (Edad del Cobre, hacia el 2800 a.C.), cuando los esteparios ya estaban entrando en Europa Central, los macroestudios de la revista Science (como el de Bohemia, República Checa) revelaron un fenómeno asombroso. Se hallaron tumbas de la cultura de la Cerámica Cordada donde los individuos estaban enterrados con el ritual estepario típico (ver Sintashta) y portaban linajes como el R1b-L51. Sin embargo, al analizar su ADN autosómico, algunos de estos hombres tenían 0% de componente de las estepas.
Registro de Muestras R1b sin ADN Estepario
| Yacimiento / Región | Antigüedad aproximada | Haplogrupo exacto | ADN Autosómico Global |
| Villabruna (Italia) | ~14.000 años | R1b1-L754 (Basal) | 100% Cazador Occidental (WHG) |
| Blätterhöhle (Alemania) | ~9.000 años | R1b-V88 | 100% Cazador Occidental (WHG) |
| Zvejnieki (Letonia) | ~8.500 años | R1b1a-P297 | 100% Cazador Oriental (EHG) |
| Els Trocs (España) | ~7.300 años | R1b1a (Basal) | 100% Agricultor Neolítico (EEF) |
| Portalón (España) | ~5.400 años | R-P297 |
81% Agricultor Neolítico (EEF) 19% Cazador Occidental (WHG) |
OTROS GRUPOS QUE PARTICIPAN DE ESTE “COMPONENTE ESTEPARIO”
Además del R1b, el “componente” genético presente en las estepas y en Europa, Asia Central e India, otros haplogrupos paternos, liderados indiscutiblemente por el R1a, así como por varios linajes minoritarios, asimilaron esta herencia autosómica.
El R1a es el otro gran protagonista de las migraciones de la Edad del Bronce. Mientras que el R1b se expandió con fuerza en Europa Occidental, el R1a (específicamente la rama R-M417) fue el vector principal en el norte y el este. Pero también el haplogrupo Q1a (La conexión siberiana); el haplogrupo J (El aporte del Cáucaso) y el haplogrupo I2 (Los supervivientes paleolíticos). El haplogrupo I2 es el linaje nativo más antiguo de los cazadores-recolectores europeos (WHG), también uno de los principales grupos genéticos que portan el componente estepario.
La Braña1 localizado en Valdelugueros, León (España) de unos 7.000 años a.P, era de haplogupo I2 y 100% Cazador Occidental (WHG).
El haplogrupo I2 llegó a las estepas mucho antes de la gran expansión de la Edad del Bronce. No apareció allí de la nada, sino a través de un proceso de migración inversa y posterior mestizaje local. Aunque el núcleo principal de los Cazadores-Recolectores Occidentales (WHG) con haplogrupo I2 permaneció en Europa Central y Occidental tras la última glaciación, varias tribus se desplazaron de forma natural hacia las llanuras orientales de lo que hoy es Ucrania y Rusia occidental. El marcador I2 quedó asimilado de forma minoritaria pero constante en la geografía de la estepa miles de años antes de que se formaran los Yamnaya.
<<La ascendencia Yamnaya (es decir, la ascendencia "esteparia") se ha caracterizado ampliamente como una mezcla entre la ascendencia Cazadores-Recolectores del Este (EHG) y la de Cazadores-Recolectores del Cáucaso (CHG), formada en una mezcla hipotética entre una fuente esteparia "norteña" y una fuente "meridional" del Cáucaso. Sin embargo, no se han identificado los orígenes exactos de estas fuentes ancestrales.>> Morten E. Allentoft . (Destacado paleo genetista, profesor en la Universidad Curtin y afiliado al Globe Institute de la Universidad de Copenhague)
EFECTO BUMERÁN
Cuando la cultura Yamnaya y las culturas herederas de las estepas migraron hacia Europa Central y Occidental hace unos 4.500 años, los portadores de esta rama esteparia del haplogrupo I2 regresaron a Europa Occidental durante el Bronce Final (aprox. 1300–800 a.C.).
Aproximadamente sobre el 1.300 a.C. y el 1.200 a.C., se dio uno de los cambios climáticos más drásticos e investigados de la Antigüedad, conocido como el Evento Climático 3.2k (o el evento de hace 3.200 años) que se caracterizó por una mega sequía severa y un enfriamiento repentino en todo el hemisferio norte. Mientras el Mediterráneo se secaba, en Europa Central y en el Mar del Norte (Jutlandia) el impacto del cambio climático del 1200 a.C. operó a la inversa, el sur de Europa sufría una sequía extrema pero el norte de Europa experimentó un enfriamiento húmedo y un aumento violento de tormentas marítimas. Las lluvias torrenciales constantes en Jutlandia pudrieron los cultivos de cereales y convirtieron los campos de pastoreo estables en ciénagas intransitables. Se multiplicaron las tormentas extremas en el Mar del Norte. Las marejadas ciclónicas golpearon la plana y desprotegida costa occidental de Jutlandia, tragándose kilómetros de tierras bajas habitadas y salinizando los acuíferos de agua dulce. Este desajuste empujó a las comunidades enteras del Mar del Norte (más de 300.000 personas) a moverse e interactuar intensamente con las regiones vecinas para redistribuir recursos y buscar nuevas zonas de subsistencia. Por lo tanto, la fecha del 1200 a.C. es sinónimo de un apocalipsis climático y social, que barrió del mapa a las superpotencias de la Edad de Bronce y sumergió a Europa y Oriente en una larga Edad Oscura antes del nacimiento de la Edad de Hierro. Es en este escenario, cuando la secuenciación profunda confirma que este linaje estepario DILUIDO aparece con frecuencias muy bajas pero constantes en Inglaterra, Escocia e Irlanda.
Por lo tanto, mientras que la mayoría de los linajes I2 actuales en Europa Central provienen de poblaciones neolíticas nativas que sobrevivieron, la rama I2-L699 es el rastro directo de aquellos cazadores que adoptaron por completo la vida en las estepas y regresaron forzadamente, una vez transformados en agricultores y pastores. No se ha detectado el haplogrupo I2-L699 en el registro de ADN antiguo de la península ibérica.
Lo mismo sucede con el R1b de los yamna, que es diferente del R1b de los europeos occidentales. Los haplogrupos del cromosoma Y (R1b) de los Yamnaya publicados NO COINCIDEN con los encontrados en europeos después de 5000 a.P., y el origen de este linaje patrilineal tampoco se ha resuelto. Pero Allentoft dice cosas interesantes sobre los yamna ucranianos:
<< bálticos y ucranianos que muestran más afinidad con la ascendencia del grupo del Paleolítico Superior de Villabruna>>
Reich acaba de demostrar y confirmar lo que Allentoft adelantaba, que los Yamnaya contienen pequeñas trazas del genoma de Villabruna (el primer R1b).
Para entender esto es necesario conocer la gran movilidad de los cazadores-recolectores del Occidente, la temprana expansión del refugio climático franco-cantábrico ibérico adelantándose 2.000 años a otros refugios euroasiáticos y la cronología de los pueblos: los Yamnaya -5000/-6000 a.P. y Villabruna -14.000 a.P. Por eso vemos en la cultura Yamna y en la cultura de Sintashta elementos culturales presentes en occidente muchos miles de años antes.
El “bumerán” es el de la cultura de Sintashta (aprox. 2100–1800 a. C.), que es una de las culturas de la Edad del Bronce. Se ubicó en la región de la estepa norte, justo al este de los montes Urales (en la frontera entre la Rusia actual y Kazajistán) y es el ejemplo arqueológico perfecto del componente genético Steppe_MLBA_West. Sintashta no fue una cultura de pastores nómadas comunes; transformaron por completo la tecnología militar y social de Eurasia debido a tres hitos: Inventaron los carros ligeros de dos ruedas con radios, tirados por caballos. Se han encontrado las huellas exactas de estas ruedas y restos de caballos sacrificados en sus tumbas, siglos antes de que aparecieran en Egipto o Mesopotamia. Sus asentamientos eran auténticas fortalezas metalúrgicas. Las casas contaban con hornos de fundición interconectados para producir armas de bronce (hachas, lanzas, dagas) a una escala nunca antes vista en la estepa. Vivían en poblados circulares o rectangulares fuertemente protegidos por murallas de madera y tierra, y fosos profundos (el sitio más famoso es Arkaim).
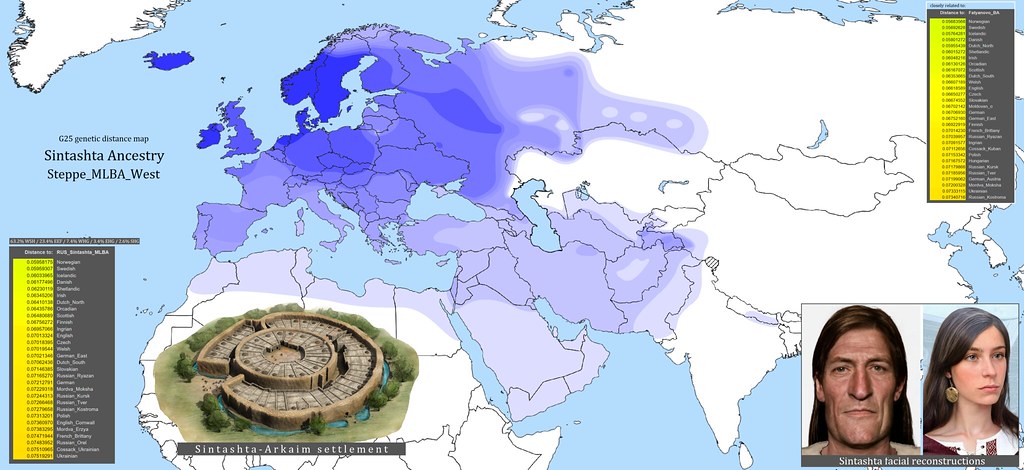 Durante mucho tiempo se pensó que los Sintashta venían directamente de los Yamnaya (Steppe_EMBA). Sin embargo, la genética demostró que los habitantes de Sintashta eran descendientes de la Cultura de la Cerámica Cordada de Europa Central. Esto significa que sus ancestros emigraron desde la estepa hacia Europa, se mezclaron con los agricultores europeos del Neolítico (adquiriendo esa pigmentación más clara y la persistencia de la lactosa) y luego regresaron hacia el este, asentándose en los Urales, donde ahora están los Bashkires. La cultura de Sintashta se descubrió y excavó precisamente en los límites de la actual Baskortostán. Los bashkires viven hoy sobre las mismas tierras donde los guerreros de Sintashta construyeron sus fortalezas circulares hace miles de años. Aunque los bashkires no son descendientes directos o puros de Sintashta, sí llevan su huella en el ADN debido a la asimilación de poblaciones a lo largo de la historia, actualmente entre un 15% y un 25% de los hombres bashkires portan el haplogrupo R1a-Z93 tipio de la Cerámica Cordada de Europa Central. Otro porcentaje muy alto es el del haplogrupo R1b-L23 (negativo en L51). De hecho, los bashkires son uno de los grupos humanos modernos con mayor concentración de este linaje genético específico a nivel mundial. Tienen aproximadamente un 60% de componentes occidentales y un 40% de componentes siberianos.
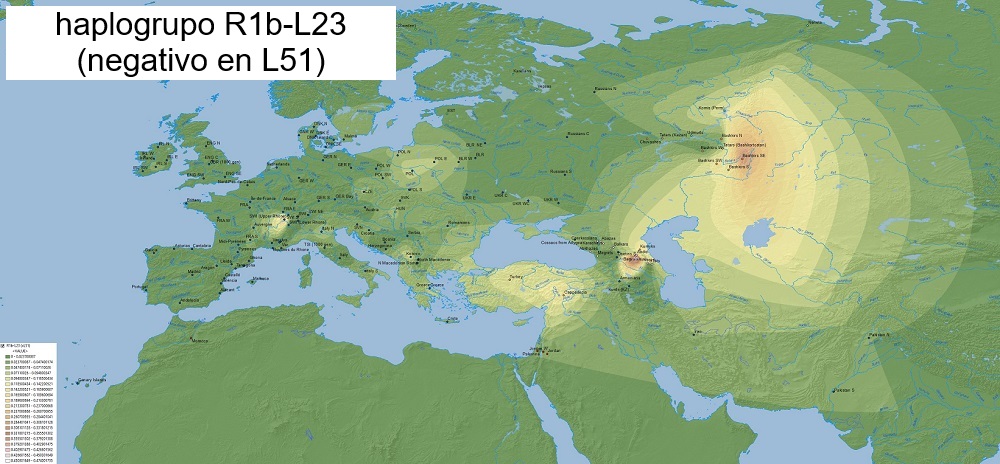 La nomenclatura R-L23 (xL51) significa que un individuo porta la mutación L23, pero da negativo para la mutación L51.
El “bumerán” de la cultura Afanasievo. La cultura Afanasievo fue una migración de pastores Yamnaya que se marcharon hacia el este de Asia en lugar de hacia Europa. Fue una población de pastores nómadas que floreció durante el Bronce Temprano, aproximadamente entre el 3300 a.C. y el 2500 a.C. en la región de los Montes Altái y la cuenca de Minusinsk, en el sur de Siberia y el noroeste de Mongolia. En la última revisión de Lazaridis y Reich (2025) han vuelto a secuenciar los individuos de Afanasievo y han recalibrado 5 muestras en R-L51 (y su subclado L151) allí arriba en el 2800 a.C., han confirmado que el linaje ya estaba presente en la población de la estepa antes de que los clanes se dividieran en direcciones opuestas. Como documenta el estudio, entre sus filas viajaban hacia el este los portadores más antiguos conocidos de mutaciones avanzadas de R1b (incluyendo marcadores bajo L51/P310). Paralelamente, las poblaciones de la periferia noroccidental de la estepa (clina del Dnipro) avanzaron hacia Europa Central. Al revés que sus hermanos orientales, estos sí se mezclaron intensamente con los cazadores y agricultores centroeuropeos de los bosques, dando origen al linaje R-L51 occidental que terminaría conquistando el Atlántico.
El R-L51 que se asocia a la órbita de Afanasievo es genéticamente diferente al R-L51 centroeuropeo, tanto en sus mutaciones internas secundarias como, sobre todo, en el mapa global del ADN que los acompaña. El macroestudio de Lazaridis y David Reich permitió trazar estas sutiles pero definitivas diferencias.
El ADN Autosomico de Afanasievo está compuesto exclusivamente por la mezcla de Cazadores Orientales (EHG) y del Cáucaso (CHG). Tiene un 0% de componente genético de los Agricultores Neolíticos Europeos (EEF) y UNA PIZCA de los Cazadores-Recolectores Occidentales (WHG). Este linaje paterno de Afanasievo en el este sufrió un trágico callejón sin salida evolutivo y demográfico. Sufren una sustitución radical por la cultura Sintashta (R1a).
Es R1b-Occidental DIFERENTE del R1b-Estepario?
Dado que el acervo genético del cromosoma Y de los Yamnaya está representado principalmente por el haplogrupo R1b (como se muestra para ambas subpoblaciones Yamnaya estudiadas hasta la fecha), surge la pregunta de si los cromosomas Y de los Yamnaya también se originaron en Asia occidental.
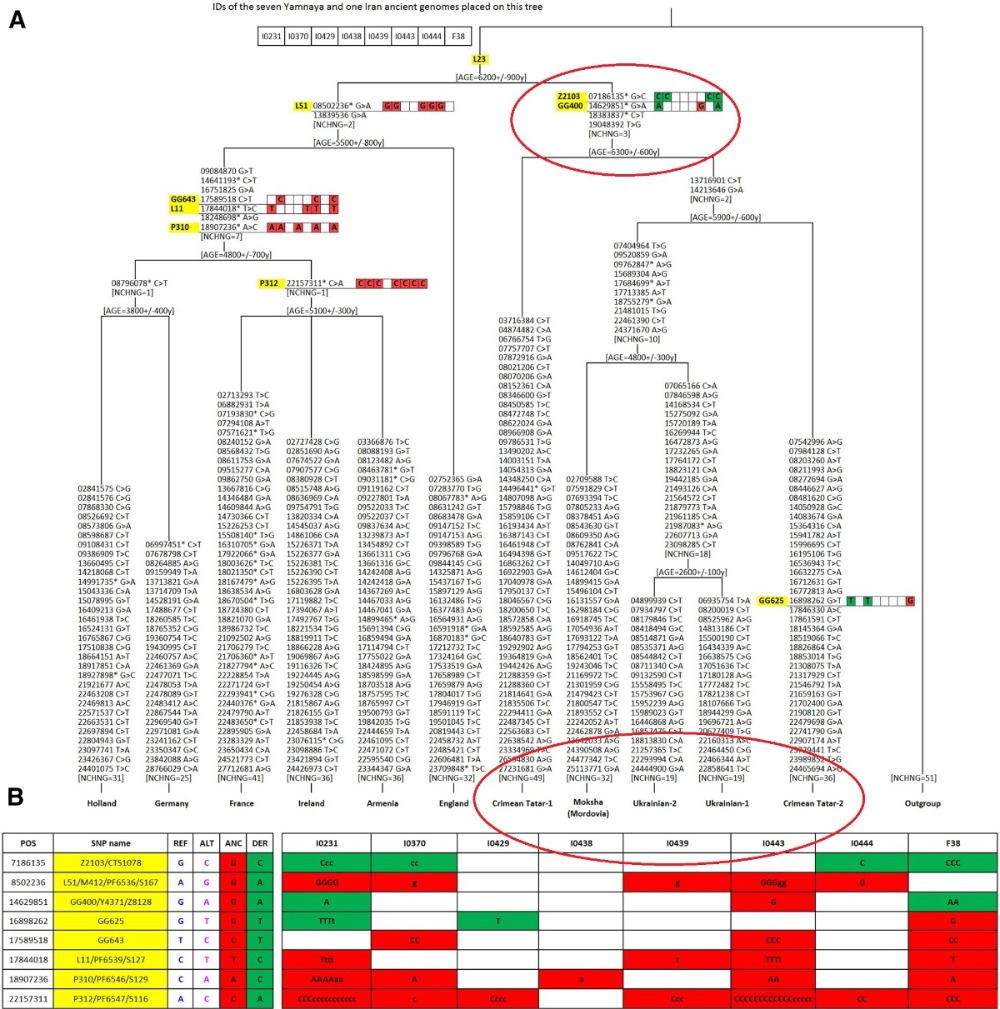
 Balanovsky et al. (Instituto de Genética General Vavilov y Centro de Investigación en Genética Médica, Moscú, Rusia) demostraron que nuestro árbol filogenético del haplogrupo R1b muestra claramente que, además de la conocida rama R-L51 predominante en Europa occidental, existe una rama R-GG400 distinta en Europa oriental. En el núcleo demográfico de la cultura Yamnaya clásica de las estepas no se ha encontrado ningún individuo con el haplogrupo R1b-L51.
Los marcadores que definen esta rama R-GG400 oriental se revelaron en un conjunto de secuencias del cromosoma Y publicadas (Karmin et al. 2015; Hal-last et al. 2015; Batini et al.2015). Aunque se observó que los cromosomas Y de Yamnaya no pertenecen a la rama predominante europea R1b-L11 (Poznik et al. 2016) y que un individuo iraní de la Edad del Hierro portaba la misma rama R1b que los individuos de Yamnaya (Broushaki et al. 2016), la distribución geográfica de esta rama no se había descrito con más detalle hasta ahora.
Por lo tanto, Balanovsky et al demostraron que esta rama oriental R-GG400 es de igual nivel filogenético y edad similar a la rama R-L51 occidental, pero con una distribución geográfica contrastante. La distribución de la rama occidental R-L51 es bien conocida, comprende más de la mitad del acervo paterno de Europa occidental y se encuentra en frecuencias más bajas en Europa del Este (Myres et al. 2011). Los datos que recopilaron sobre la distribución geográfica de la rama oriental de R-GG400 son escasos, pero ubican su área principal en las estepas de Europa del Este y Asia Occidental.
En resumen, las antiguas muestras Yamnaya se encuentran en la rama R-GG400 "oriental" del haplogrupo R1b-L23, lo que demuestra que los descendientes paternos de los yamnaya todavía viven en la estepa póntica y que LA ANTIGUA POBLACIÓN YAMNAYA NO FUE UNA FUENTE IMPORTANTE DE LINAJES PATERNOS EN LOS ACTUALES EUROPEOS OCCIDENTALES.
http://labs.icb.ufmg.br/lbem/pdf/Balanovsky2017HGlowlandAsia.pdf
Técnicamente, poseer la mutación GG400 significa que un hombre pertenece a la línea de herencia paterna directa de los antiguos jefes y guerreros enterrados en los kurganes (túmulos) de Rusia y Ucrania hace 5.000 años.
La mutación GG400 (y su nodo padre Z2103) se ha encontrado en Europa Occidental, pero bajo un contexto geográfico y arqueológico sumamente específico. Aparece de forma MUY residual y esporádica en el registro de ADN antiguo de Europa central en la edad del bronce, y con frecuencias muy bajas que rara vez superan el 1% o 2% de la población masculina moderna occidental.
El GG400 en Occidente no se debe a los jinetes de los caballos de la Edad del Bronce, sino a movimientos de población mucho más recientes durante el Imperio Romano. Roma movilizó legiones enteras y esclavos desde los Balcanes, Anatolia y el Levante hacia las fronteras de Hispania, Galia y Britania. Soldados sirios, tracios o griegos portadores de GG400 terminaron asentándose en Occidente, dejando su huella paterna de forma permanente pero diluida. También durante las migraciones de la Edad Media, ciertas ramas de Z2103/GG400 se integraron en el fondo genético de las poblaciones judías (como los asquenazíes) durante su paso por el Imperio Bizantino y los Balcanes, dispersándose posteriormente por toda Europa Central y Occidental.
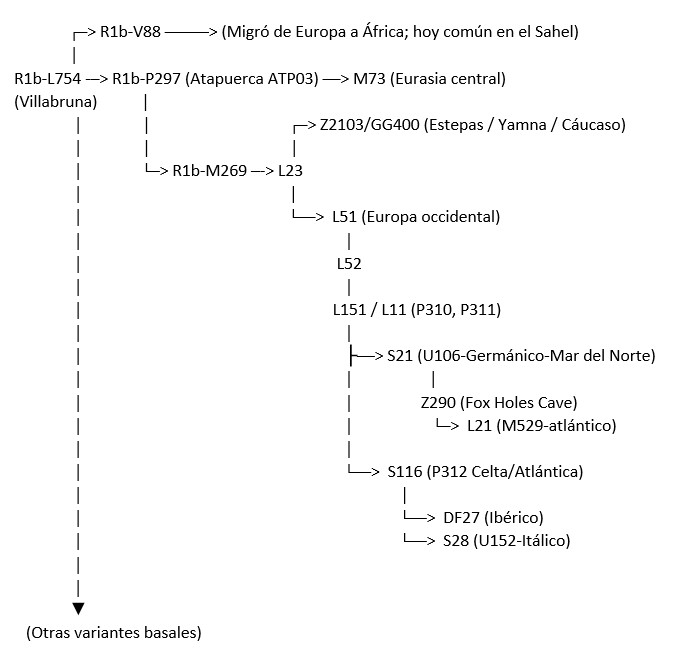
Tener una variante pre-esteparia o "hermana" de M269 significa que tu línea paterna directa proviene de un "primo hermano" del linaje Yamnaya. Compartes con ellos la raíz profunda del árbol (el ADN del cromosoma Y), pero tu linaje familiar NO TOMÓ EL TREN HACIA LAS ESTEPAS, se bajó mucho antes de que comenzaran las grandes migraciones hacia Europa Occidental.
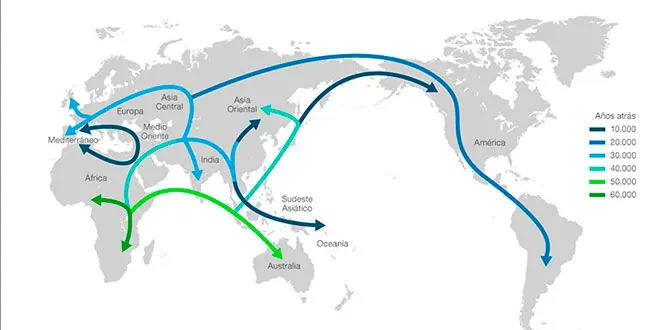
Estudios de ADN antiguo, publicados en Nature, sobre la genómica de los cazadores-recolectores del sureste de Europa, analizaron restos óseos del Paleolítico y Neolítico en la región del bajo Danubio y las Puertas de Hierro (entre Serbia y Rumanía). Hallaron individuos portadores de formas arcaicas y basales de R1b (antepasados directos en el árbol filogenético de M269) que vivieron hace unos 11.500 y 8.200 años. Al analizar su genoma completo (autosómico), se demostró que eran genéticamente una mezcla entre Cazadores-Recolectores Occidentales (WHG) y Orientales (EHG), con 0% de componente estepario (Yamnaya) y 0% de componente agricultor de Anatolia.
George B. J. Busby y su equipo decidieron no dar ninguna estimación de edad concreta para el linaje R-M269, concluyendo que las herramientas y datos de la época eran insuficientes para calcularla de forma fiable, pero que es poco probable que hayan sido llevados a Europa con los agricultores migratorios como afirmaba el estudio de Balaresque et al. (2010). En su estudio confirmo que la distribución espacial del haplogrupo M269 del cromosoma Y puede dividirse mediante R-S127 en linajes europeos y euroasiáticos occidentales.
En épocas ligeramente posteriores, estos linajes fueron absorbidos por los Primeros Agricultores Europeos (EEF) procedentes de Anatolia. La cultura de las estepas (Yamnaya) se consolidó mucho después (hace unos 5.000 años), estos individuos R1b de los Balcanes no podían tener ADN estepario porque ese componente aún no se había inventado en la historia de la humanidad.
LA RUTA DE MIGRACIÓN INVERSA
Los datos indicaron que el linaje R1b ya se encontraba en el sur-este de Europa al final de la última glaciación (Villabruna). La hipótesis actual más aceptada es que UN RAMAL de estos cazadores balcánicos o del suroeste de Asia se desplazó hacia el norte, cruzando las estepas ucranianas en dirección al río Volga. En las estepas, este linaje minoritario se mezcló con los habitantes locales y del Cáucaso, creando el componente autosómico estepario (Yamnaya). Miles de años después, ese componente o mezcla autosómico regresara a Europa muy diluido en la Edad del Bronce, muy probablemente su entrada sea por el mar del norte. Mientras tanto, los primos R1b que se habían quedado en los Balcanes sin moverse fueron asimilados genéticamente por los agricultores neolíticos.
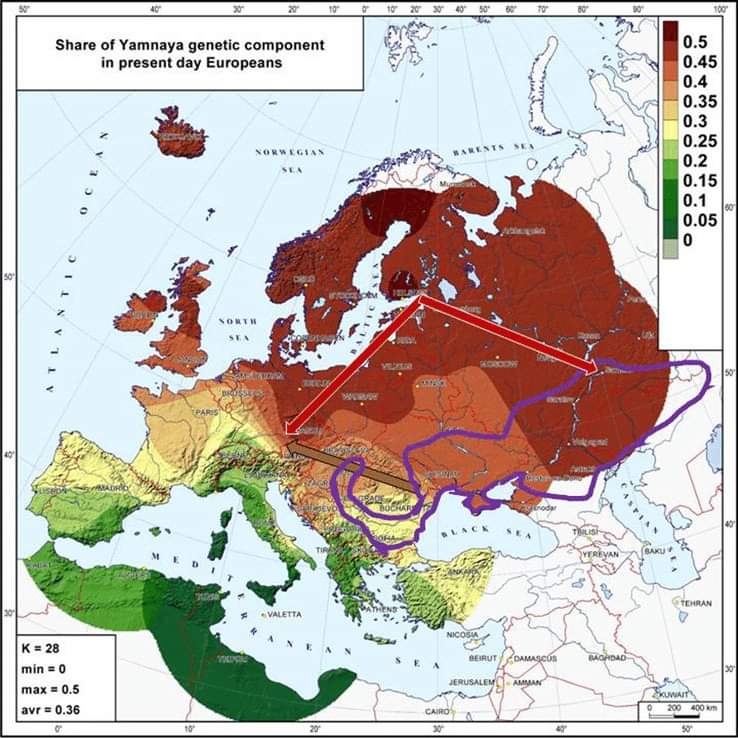
Vemos que el hecho de tener un haplogrupo especifico no significa tener “ascendencia esteparia”. Como hemos visto, se puede ser portador del haplogrupo R1b-L51 (o de cualquiera de sus ramas descendientes como P312, DF27 o U106) y no tener absolutamente nada de ADN autosómico estepario.
Al igual que ocurría con el marcador M269, es perfectamente posible debido a las leyes de la herencia genética, el mestizaje histórico y la colonización global.
Sorprendentemente hay un individuo R1b-M269 de 5.700 años en Inglaterra (Ingleborough Hill, Fox Holes Cave) con ADN Autosómico 100% de Agricultor Neolítico Europeo (EEF) que carece por completo de componente estepario. Al limpiar los datos, se afinó la muestra y se vio que la muestra pertenecía en realidad al haplogrupo R-Z290 (o subclades avanzadas de R-P312), también conocido bajo el árbol filogenético como una rama clave de R1b-L21. Dado que este linaje no existía en el 3700 a.C., la conclusión científica actual es que los huesos de este individuo son en realidad de la Edad del Bronce tardía, pero NO TIENE “ascendencia esteparia”. La mutación R-Z290 es aprox. del 2700 a. C. y su origen geográfico más probable es la región del Bajo Rin / Europa Central (el área geográfica que hoy abarca los Países Bajos, el oeste de Alemania y bélgica). El análisis genético de alta resolución determinó que el hombre de Fox Holes Cave pertenece a la rama R-M269 (específicamente río abajo hacia la mutación R-U106 / A7208).
Si la expansión masiva del R-M269 está ligada a la Edad del Bronce y al Vaso Campaniforme (a partir del 2500 a. C.), ¿qué hacía un hombre con el linaje derivado de R-M269 en Inglaterra 1200 años antes de esa migración?
La hipótesis del Linaje Relicto Pre-Estepario sugiere que la mutación de R-P297 a R-M269 no ocurrió exclusivamente en las estepas rusas, sino que ya existía de forma residual e indetectable entre los cazadores y agricultores de Europa Occidental. Bajo esta teoría, tanto Atapuerca (ATP3) como Fox Holes Cave (I3035) representan líneas NATIVAS EUROPEAS muy antiguas que ya estaban en el continente antes de las supuestas "invasiones" de la estepa.
Dado que R-P297 es el padre directo de R-M269, el individuo de Inglaterra es inevitablemente un descendiente directo ("hijo" a nivel macroevolutivo) del linaje de Atapuerca. Casos como Atapuerca (ATP3) demostrando que el "padre" P297 ya estaba en el sur de Europa hace 5.400 años nos recuerdan que la genética de poblaciones no siempre es una línea recta perfecta y que Europa guardaba secretos biológicos antes de las grandes migraciones.
Entonces, ¿en qué consiste este PERFIL GENETICO o catalogación de “ascendencia esteparia”?
ADN AUTOSÓMICO
La “ascendencia esteparia” se detecta analizando cientos de miles de marcadores a lo largo de todo el genoma, el ADN AUTOSÓMICO. No se analiza un solo gen, sino que se escanean simultáneamente cientos de miles de SNPs (Polimorfismos de Nucleótido Único) a lo largo de todo el ADN autosómico para compararlos con muestras de esqueletos arqueológicos de referencia [Nature, Raghavan et al., 2014].
El ADN autosómico son los cromosomas que heredas de forma combinada de tu padre y de tu madre, y representa el 99% de toda tu información genética. A diferencia de los linajes específicos (como el cromosoma Y, que solo pasa de padres a hijos varones, o el ADN mitocondrial, que solo pasa de madres a hijos), el ADN autosómico es el verdadero mapa que define quién eres. Se encuentra en los pares de cromosomas del 1 al 22, y son idénticos en hombres y mujeres. (Los seres humanos tenemos 23 pares de cromosomas en el núcleo de cada célula). El par 23 son los cromosomas sexuales. En palabras muy resumidas, el ADN autosómico es el ADN global que heredas de todos tus antepasados (tanto de tu padre como de tu madre), mezclado al 50% en cada generación.
En Europa, la ascendencia “esteparia” se ha identificado hasta ahora solo en forma DILUIDA Y MUY MEZCLADA, pero el origen de esta mezcla y el mecanismo por el cual la ascendencia se propagó posteriormente con el Corded Ware Culture (Cultura de la Cerámica Cordada) han permanecido desconocidos.
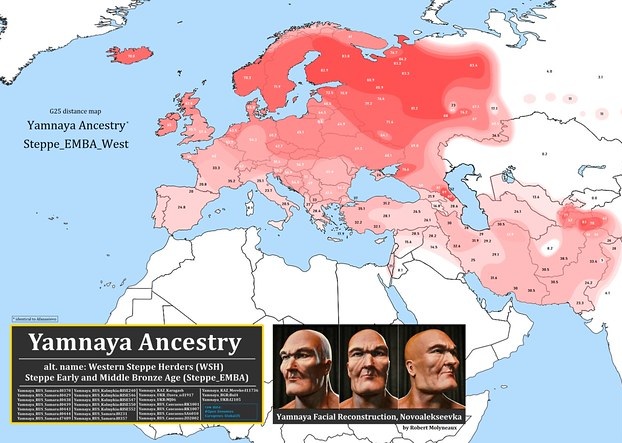
Aunque parezca una contradicción, la ciencia de la paleogenómica demuestra que este escenario es perfectamente posible por dos razones fundamentales: el origen cronológico del linaje y la dilución del ADN a lo largo de las generaciones. En la literatura científica de paleogenómica, este componente se identifica principalmente con la cultura Yamnaya (hace unos 5.000 años). Ese componente se conoce científicamente como "ascendencia esteparia" (en inglés, Steppe ancestry), componente de las Estepas o componente Yamnaya.
Hasta el 2024, para que el algoritmo marcase positivo en Steppe EMBA East, busca la firma de una fusión genética doble muy particular en los cromosomas:
- Cazadores-Recolectores del Este (EHG) que habitaba las llanuras de las actuales Rusia y Ucrania, su ADN estaba compuesto por una mezcla de aproximadamente un 70% de herencia ANE y un 30% de herencia Cazadores-Recolectores OCCIDENTALES (WHG).
- Cazadores-Recolectores del Cáucaso (CHG), la fusión de dos de los linajes más antiguos de la humanidad fuera de África; Ancestros Basales Euroasiáticos (Basal Eurasian) y Ancestros del Norte de Eurasia (ANE).
Era importante la afinidad con la herencia Ancestral de Eurasia del Norte (ANE): el linaje ANE (Ancestros del Norte de Eurasia) y el linaje WHG (Cazadores-Recolectores OCCIDENTALES) eran "poblaciones hermanas", significa que ambos grupos descendían directamente de un mismo ancestro común, pero se separaron geográficamente y evolucionaron de forma independiente durante miles de años sin cruzarse.
El software informático identifica los bloques específicos de ADN donde estos DOS componentes ancestrales están entrelazados de la forma exacta en que lo estaban en las poblaciones del Altái y el este de Siberia hace 5.000 años. Son los bloques de ligamiento o segmentos de IBS (Identity by State / Identidad por Estado). Dado que el ADN autosómico se hereda al 50% de cada progenitor y se mezcla (recombina) en cada generación, la herencia no se transmite en "letras" sueltas, sino en fragmentos o tiras largas de cromosomas que viajan intactas a lo largo de los siglos. Se escanean los SNPs, buscan patrones repetidos y se hace cálculo de la longitud de los bloques.
La genética del Componente Estepario EMBA en 2025.
Según el estudio de Lazaridis y David Reich (2025), el modelo anterior de dos componentes para la ascendencia Yamnaya (Steppe EMBA East) ha sido superado por una estructura más compleja de tres raíces principales. El nuevo desglose identifica a la clina Cáucaso-Bajo Volga (CLV) como la fuente principal, junto con aportes de cazadores del Dnipro y del Volga Medio, invalidando la fórmula binaria simple.
En 2025 se publicó un revolucionario macroestudio "The Genetic Origin of the Indo-Europeans" (publicado en la revista Nature por Iosif Lazaridis, David Reich y un gigantesco equipo internacional).
Este trabajo cambia muchos esquemas al secuenciar 435 genomas antiguos para resolver de una vez por todas de dónde salieron los Yamnaya y sus linajes. Este artículo de Lazaridis y Reich es el mapa genómico más actualizado y avanzado del que dispone la ciencia para rastrear el origen y la dispersión de los linajes europeos modernos. Su conclusión es categórica, el origen de los Yamnaya tiene tres "clinas" genéticas.
El estudio demuestra que la población Yamnaya (que emergió hacia el 3300 a.C.) no apareció de la nada, sino que se formó por la mezcla de poblaciones previas del Eneolítico a través de tres grandes ejes o líneas de flujo genético (clinas):
- La clina Cáucaso-Bajo Volga (CLV): Una mezcla directa entre un 40% - 50% de cazadores-recolectores del Bajo Volga y un 50% - 60% de poblaciones neolíticas del Cáucaso. Es aquí donde se gesta el núcleo genético Yamnaya.
- La clina del Volga Medio: Que conectaba a los cazadores orientales con los del norte en una combinación exacta del 70% ANE y 30% WHG, que es la que define formalmente a los Cazadores-Recolectores Orientales (EHG). Por eso, de forma simplificada, la clina del Volga Medio es un componente 100% EHG.
- La clina de la Estepa-Bosque: Una zona de contacto e intercambio genético entre los Cazadores-Recolectores Occidentales (WHG) 20% a 35%, el Clina CLV en 65% a 80% y los Agricultores Neolíticos Europeos (EEF) en 0% a 5%. Esta zona de contacto está situada en la franja norte y noroccidental de la estepa póntica (hacia el norte de Ucrania y el oeste de Rusia, en Polonia y los Países Bálticos).
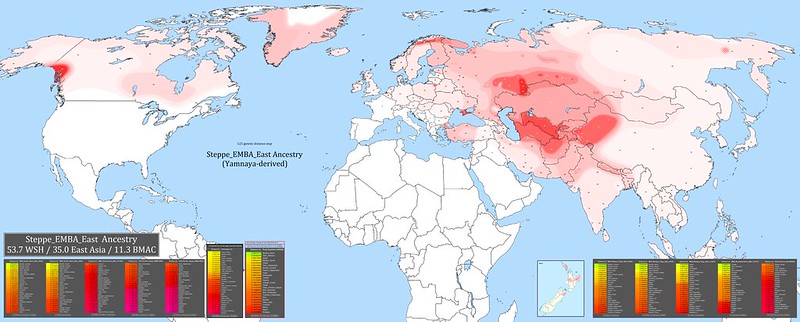
El ADN de los individuos de las estepas EMBA (Early-Middle Bronze Age), como los Yamnaya, no era homogéneo en su origen remoto, sino el resultado de la mezcla de esas poblaciones anteriores.
La fusión de estos tres grupos en las llanuras del norte del mar Negro dio origen al perfil genético Yamnaya o componente de las estepas. Si los cazadores del este (EHG) y los del Cáucaso (CHG) son los "padres" del componente de las estepas (Yamnaya), el grupo ANE y el grupo Cazadores-Recolectores Occidentales (WHG) son los "abuelos".
La Clina Estepa-Bosque (La cuna del R-L51)
Cuando el estudio de Reich analiza las muestras de la clina Estepa-Bosque (Dnipro, al oeste de Rusia, en Polonia y los Países Bálticos), el modelo matemático cambia radicalmente debido a la absorción de cazadores locales europeos.
Las poblaciones de esta franja periférica absorbieron entre un 20% y un 35% de ADN de cazadores-recolectores locales de Europa del Este y del clúster cazadores-recolectores occidental (WHG). Los genetistas detectan en la Cultura Serednii Stih (~4000 a.C. cultura arqueológica intermedia de la clina del Dnipro) el punto exacto donde la base genética de la estepa se diluye con el aporte cazador europeo (WHG). Es precisamente en este entorno con un alto componente cazador-recolector europeo (WHG) integrado donde el linaje R1b-L51 prosperó.
Ascendencia antigua (ANE)
El término ANE es el nombre dado en arqueo-genética al componente genético ancestral asociado con la cultura de Mal'ta-Buret. Este componente genético desciende parcialmente de los euro-asiáticos orientales, pero la mayoría de la ancestría genética de los ANE está congeniada con poblaciones euro-asiáticas OCCIDENTALES como los cazadores-recolectores occidentales (WHG), labradores neolíticos europeos (ENF) y cazadores-recolectores del Cáucaso (CHG, con mayoría de ascendencia basal euroasiática occidental).
"esa presencia oriental en Asia de una población emparentada con los euroasiáticos occidentales contemporáneos ofrece la posibilidad de que las características craneales no orientales de Asia de los primeros americanos se derivaran del Viejo Mundo",, " la presencia de una antigua firma genómica euroasiática occidental en el área del Baikal antes y después del UCM sugiere que partes del centro-sur de Siberia estuvieron ocupadas por humanos durante las etapas más frías de la última edad de hielo" Roberta Estes , científica, genealogista genética.
El ADN del chico de Mal'ta (MA-1) demostró que genéticamente, esta persona NO TENÍA NINGUNA SEMEJANZA CON LAS POBLACIONES DE ASIA ORIENTAL, pero se parecía a los europeos que se habían trasladado a Asia occidental. Los autores compararon la información del fenotipo obtenible de MA-1 con el Hombre de Hielo (Otzi). Esto es particularmente interesante a la luz del cambio de pigmentación de piel más oscura en África a piel más clara en Eurasia, y la pregunta de cuándo ocurrió este cambio de apariencia. MA-1 muestra una afinidad genética con las personas contemporáneas del norte de Europa, la población hoy en día con la frecuencia más alta de fenotipos de pigmentación clara.
Los autores compararon el ADN de MA-1 con un conjunto de 124 SNP identificados en 2001 por Cerquira como informativos sobre el color de la pigmentación de la piel, el cabello y los ojos, aunque también advierten que este método tiene una precisión de predicción limitada. Dado eso, dicen que MA-1 tenía cabello, piel y ojos oscuros, pero no pudieron secuenciar el conjunto completo de SNP. MA-1 también presentó el valor de SNP asociado con un alto riesgo de calvicie de patrón masculino y no presentó tolerancia a la lactosa. MA-1 tampoco presenta la mutación asociada con el grosor del cabello y los incisivos en forma de pala en los asiáticos.
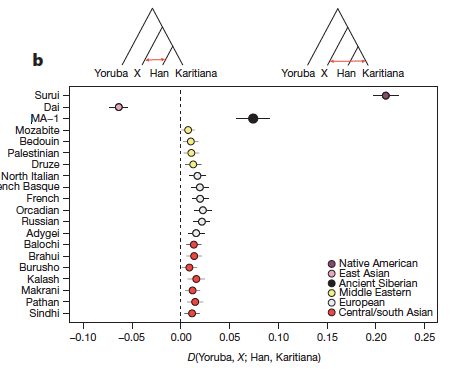
Vascos, Franceses, Escoceses y Rusos son los mas cercanos al niño de Mal´ta (MA1)
ADN OCCIDENTAL (WHG) entre los esteparios?
SI, el componente "Steppe MLBA West" (ancestría de la Estepa de la Edad del Bronce Medio y Tardío-Occidental) representa la segunda gran oleada genética de los pastores de las estepas. A diferencia del grupo EMBA (Yamnaya), este perfil genético muestra el REGRESO de las poblaciones de la estepa hacia Europa, donde se mezclaron intensamente con los agricultores locales antes de expandirse de nuevo. MLBA (Middle-Late Bronze Age) es la Edad del Bronce Medio y Tardío (aproximadamente entre el 2000 a. C. y el 1200 a. C.).
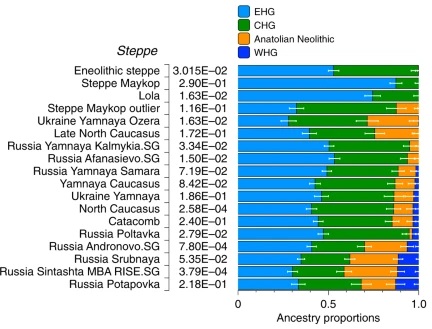
La diferencia principal es la mezcla con agricultores neolíticos europeos. Mientras el Steppe EMBA (Yamnaya) era una mezcla pura de cazadores-recolectores y no tenían apenas ADN de los agricultores de Europa, los Steppe MLBA West (Sintashta / Corded Ware) son los descendientes de los anteriores, pero tras vivir en Europa Central y Oriental se expandieron hacia el este y el centro de Asia. Su ADN es aproximadamente un 60-70% Steppe EMBA y un 30-40% de Agricultores Neolíticos Europeos (EEF, Early European Farmers) y es el responsable directo de llevar las lenguas indoiranias hacia Asia Central, Irán y el norte de la India.
EL ADN AUTOSÓMICO DE LOS VASCOS
El ADN autosómico de los vascos ha sido objeto de intensos estudios por parte de consorcios científicos internacionales y laboratorios de élite en paleogenómica. El interés radica en que son considerados una anomalía genética y lingüística en Europa Occidental. Es un cálculo matemático, utilizando herramientas avanzadas de bioestadística y paleogenómica. El programa qpAdm (software AdmixTools) calcula proporciones de mezcla sin necesidad de que las poblaciones analizadas sean puras. Los principales investigadores y laboratorios que han descifrado su mapa autosómico son los siguientes:
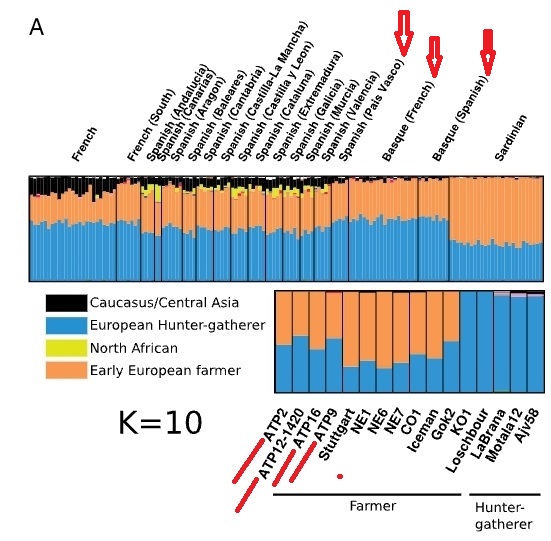
Mattias Jakobsson y Torsten Günther (Universidad de Uppsala, Suecia, 2015) publicaron un estudio clave en la revista PNAS ("Ancient genomes link early Balkan farmers to Stalsögra and Demonstrate Basque isolation"). Secuenciaron esqueletos neolíticos y calcolíticos de la cueva de El Portalón (Atapuerca, Burgos) y los compararon con poblaciones modernas. El ADN autosómico determino que los vascos modernos muestran la mayor proximidad autosómica con los primeros agricultores neolíticos (EEF) de la península, confirmando que su herencia mayoritaria (más del 50%) procede de los primeros labriegos de la Edad de Piedra y mezclados con cazadores locales y ausencia de aporte estepario.
El estudio de Olalde y David Reich (2019): Analizó cientos de genomas antiguos de toda la península ibérica a lo largo de 8.000 años. Olalde incluyó a 2.862 individuos modernos de control, entre los cuales más de 190 eran vascos contemporáneos. De los 271 genomas antiguos analizados, aproximadamente entre 15 y 20 muestras arqueológicas proceden directamente del territorio que hoy ocupa la Comunidad Autónoma del País Vasco y la Comunidad Foral de Navarra (la zona vasco-navarra actual), pero NINGUNO de Bizkaia o Gipuzkoa. En la actualidad no existen estudios publicados de ADN autosómico antiguo (paleogenómicos) realizados sobre restos óseos procedentes de la provincia de Bizkaia y Gipuzkoa.
La mayor parte de los restos analizados por Olalde en esa área geográfica se concentran en 4 yacimientos clave de la Edad del Bronce y de la Edad del Hierro.
- Cueva de la Renclusa (1 muestra) y Cueva de los Husos de Álava (3 muestras): Aportaron restos óseos de la Edad del Bronce. Es en estos individuos donde los científicos detectaron la entrada exacta de los primeros bloques de ADN autosómico estepario traído por el perfil Campaniforme Centroeuropeo, y conviviendo con los linajes locales. NO es un componente estepario puro (Yamnaya) que viajó directamente desde Rusia hasta Álava. Se pudo comprobar que, en las unidades analizadas de Los Husos, el componente autosómico estepario neto (~15-20%) llegó diluido dentro de ese bloque centroeuropeo.
- Yacimiento de San Juan ante Portam Latinam (Laguardia, rioja Alavesa): Las 8 unidades arrojaron un 0% de componente autosómico estepario. Un enterramiento colectivo del Neolítico Final/Calcolítico sumamente famoso en la arqueología española por las evidencias de una gran masacre violenta. Los genomas extraídos de este punto sirvieron para demostrar cómo era el ADN nativo justo antes de que llegaran las migraciones del Vaso Campaniforme.
- Navarra (Yacimientos del Ebro y Pirineos): Utilizo 6 muestras de la Edad del Hierro, 5 del yacimiento Alto de la Cruz en Cortes y 1 de Abauntz en el valle de la Ultzama . Al comparar estos restos navarros con muestras coetáneas de Cataluña o el centro de España, se demostró que todos compartían el mismo perfil autosómico y que ese perfil es el que ha sobrevivido intacto en los vascos modernos.
Olalde usó a ATP03 (calcolítico de Atapuerca-Burgos) en 2019 precisamente para demostrar la desconexión entre un marcador patrilineal y la sangre global. El algoritmo de 2019 lo agrupó de forma invariable junto a la población NATIVA del Calcolítico de la península ibérica. El cálculo arrojó un 0% de componente estepario, y las evidencias definitivas de que existían pequeños linajes R1b en el norte de España plenamente integrados en las comunidades nativas europeas de agricultores, siglos antes de que ocurriera el drástico reemplazo demográfico y genético de la Edad del Bronce.
Todos los individuos de El Portalón que vivieron en el Neolítico y el Calcolítico / Edad del Cobre (entre el 5500 a.C. y el 2500 a.C.) arrojaron un 0% absoluto de componente estepario (Yamnaya) en los modelos qpAdm de Olalde menos ATP09.
La re-secuenciación de alta resolución y posterior reclasificación oficial de la muestra ATP03 (frecuentemente catalogada en las bases de datos de Harvard como ATP3) fue publicada en julio de 2022. Al pasar el genoma de ATP03 (R1b-P297) por los filtros modernos de qpAdm, el resultado sigue arrojando un 0% absoluto de componente autosómico estepario (Yamnaya). Olalde, como Mattias Jakobsson y Torsten Günther de Uppsala, nos dice que los vascos sí que recibieron el componente autosómico de las estepas presente muy diluido en el campaniforme centroeuropeo, pero con un mestizaje en el Bronce. Con 0% de aportes históricos del Hierro peninsular. Los mismos procesos de mezcla que el resto de los íberos antes de cerrarse genéticamente.
Tenemos que recordar el Evento Climático 3.2k (1.300 a.C. al 1.200 a.C.), uno de los cambios climáticos más drásticos y que se caracterizó por una mega sequía severa y un enfriamiento repentino en todo el hemisferio norte.
André Flores-Bello y Lluís Quintana-Murci (2021) publicaron en Current Biology, un muestreo geográfico más exhaustivo y completo de la historia sobre los vascos. Analizó más de 600.000 marcadores genéticos autosómicos por individuo en microregiones de todo el País Vasco, Navarra y el País Vasco francés. Este estudio demostró que el verdadero aislamiento genético vasco comenzó mucho más tarde de lo que estimaron Jakobsson-Günther y Olalde: ocurrió en la Edad del Hierro (500 años a.C.) y durante la época romana, donde la barrera cultural del Euskera (el idioma) actuó como el principal freno para evitar el mestizaje posterior con romanos o musulmanes.
Bibliografia:
-
Iosif Lazaridis, David Reich, Olalde I, et all (2025) "The Genetic Origin of the Indo-Europeans" (publicado en la revista Nature).
- Günther, T., Valdiosera, C., Malmström, M., Ureña, I., Rodriguez-Varela, R., Svensson, E. M., ... & Jakobsson, M. (2015). Ancient genomes link early Balkan farmers to Stalsögra and demonstrate Basque isolation. Proceedings of the National Academy of Sciences, 112(38), 11917-11922. doi.org
- Olalde, I., Mallick, S., Juarez-Blas, S., Cheronet, O., Broomandkhoshbacht, N., Lau, A. M., ... & Reich, D. (2019). The genomic history of the Iberian Peninsula over the past 8000 years. Science, 363(6432), 1230-1234. doi.org
- Flores-Bello, A., Mas-Sandoval, A., Cruces-Egusquiza, A., Lopez-Onaindia, D., Azkarate, A., de la Rua, C., ... & Comas, D. (2021). Analysis of the human Y-chromosome and mitochondrial DNA diversity in the Basque Country: A multidisciplinary approach. Current Biology, 31(10), 2187-2196. doi.org
- La diferenciación genética entre poblaciones de tierras altas y de tierras bajas configura el paisaje cromosómico Y de Asia occidental. O. Balanovsky et all. http://labs.icb.ufmg.br/lbem/pdf/Balanovsky2017HGlowlandAsia.pdf